同じ波長の光、同じ音圧波形、同じ化学分子を提示しても、ミツバチ、マウス、魚、鳥、ヒトが受け取る「意味」は一致しません。この事実は単なる感覚の個性ではなく、知覚・価値・行動がどう作られるかという根本問題に直結します。感覚器の物理特性、末梢と中枢の回路配線、学習と発達の制約、神経修飾系、そして生態的な選択圧という複数の階層が、それぞれ独立に種差を生み出しているからです。本記事では「同じ刺激」と「同じ意味」という言葉を分解し、比較神経科学の実証例と計算論的枠組みを対応させながら、意味が刺激の属性ではなく生物側の変換関係として生成される理由を整理します。
「同じ刺激」とは何を指すのか
物理量が同じでも、感覚入力は同じではない
比較研究で最初に決めるべきは、何を「同じ」に固定するかです。少なくとも、外界の物理刺激(スペクトル放射輝度、音圧波形、分子種と濃度)、受容器に生じる入力(受容体ごとの励起量)、そして中枢神経の活動パターンは、それぞれ別の水準です。
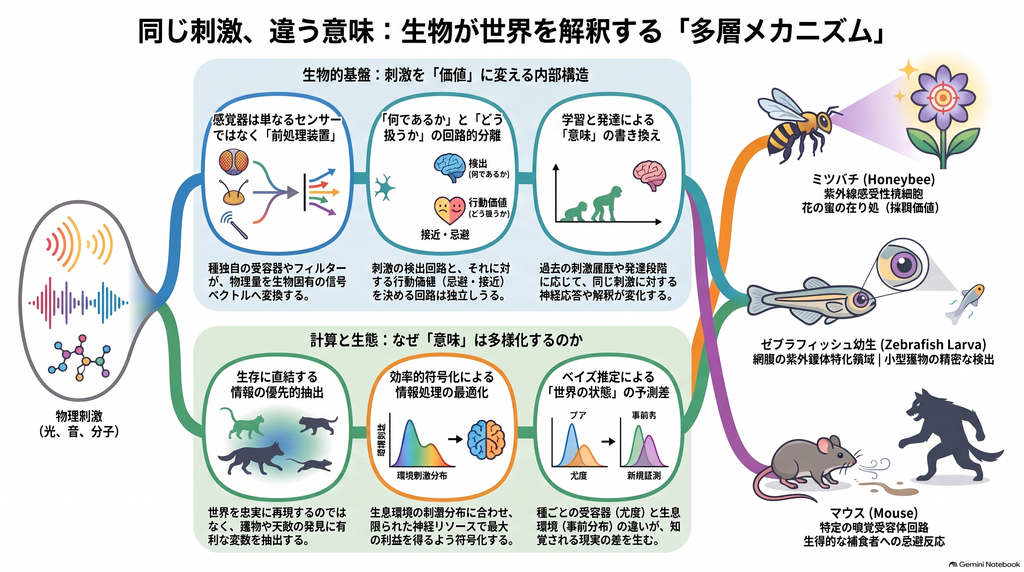
この区別は形式的なものではありません。ミツバチではおおよそ紫外・青・緑にピークをもつ三種の視細胞が電気生理学的に記録されており、マウス網膜では紫外感受性オプシンを含む独特な錐体構成が確認されています。鳥類では錐体内の色付き油滴が、光受容色素に届く前のスペクトルをフィルターします。つまり同じ光を照射しても、受容器集団に生じる信号ベクトルは種ごとに別物です。
聴覚でも同様で、同じスピーカー音圧が鼓膜・内耳・触角で同一入力になる保証はありません。ミツバチは触角のJohnston器官を介して振動を検出し、ワグルダンスに関連する機械刺激を中枢へ伝えます。化学感覚の差はさらに根本的です。哺乳類の嗅覚受容体は大規模な遺伝子ファミリーに属し、同一受容体を発現する嗅神経細胞の軸索が特定の嗅球糸球体へ収束します。一方、昆虫の主要なodorant receptor系はOrcoと組み合わさるヘテロマー性のリガンド作動性イオンチャネルとして働き、系統も膜構造も異なります。同じ分子が、文字どおり異なる分子機械によって読み取られているのです。
「意味」を三層に分ける
意味という語も曖昧なままでは扱えません。本記事では、刺激について形成される神経表現(何として符号化されるか)、行動的価値(接近・忌避・捕食・交尾などをどう決めるか)、主観的経験(どのように感じられるか)の三つを区別します。
科学的に測定しやすいのは前二者で、主観的経験は非言語動物では直接観測できない潜在変数です。「紫外刺激を弁別できる」「その刺激が捕食を引き起こす」「その紫外がヒトにない固有の色として経験される」は、論理的に別々の命題です。
種差を生む多層メカニズム
感覚器は単なるセンサーではなく前処理装置
鳥類の油滴は、入射光が色素に届く前に長波長通過型フィルターとして分光感度を整形します。ミツバチとヒトはどちらも三色型と呼べますが、色空間の座標軸そのものが異なります。
さらに重要なのは、この違いが行動価値に直結しうる点です。ゼブラフィッシュ幼生では、捕食に使う網膜領域の紫外錐体が小型獲物の検出に特化しており、遺伝学的に紫外錐体を除去すると、紫外光による捕食成績の向上が失われました。ある波長帯を「よく見えるようにする」こと自体が、「その帯域に現れる対象を餌として扱えるようにする」という意味形成の一部になっています。
検出できることと、危険とみなすことは別演算
受容器の違いを取り除いても種差は残ります。マウス嗅覚では、糸球体から先の投射が、連合学習に向いた広い皮質経路と、生得的価値づけに偏った経路に分かれることが示されています。
この分離は行動レベルで因果的にも示されました。嗅上皮の特定領域からの入力を選択的に失わせたマウスでは、嫌悪臭を検出する能力は残るのに生得的な忌避が消え、しかも後から条件付けによってその匂いを嫌うよう学習できたのです。「何が入力されたか」と「それを何として扱うか」は、回路レベルで切り分け可能だと考えられます。捕食者関連臭に応答する嗅球入力を光で活性化して防御的な不動反応を誘導できるという報告も、感覚チャネルと行動価値の対応に因果性があることを支持します。
学習と発達が意味を書き換える
意味は固定配線だけで決まりません。ミツバチでは匂いと報酬・罰の連合学習の前後で、高次のキノコ体だけでなく比較的早い段階である触角葉のカルシウム応答ダイナミクスも変化します。ゼブラフィッシュでは、looming刺激を繰り返すと逃避反応が馴化し、それに伴って全脳規模の神経集団ダイナミクスが変わります。物理刺激を変えなくても、刺激履歴が「いま脅威とみなすべきか」という解釈を変える例です。
同時に、意味を学習できる範囲そのものが遺伝子発現や細胞成熟に規定されます。マウスでは即時早期遺伝子Arcを欠くと視覚皮質の経験依存的可塑性が大きく障害され、また成体の髄鞘形成機構が可塑性を制限しうることも報告されています。
同じ計算でも、実装される化学は異なる
報酬や罰は単一の普遍的物質ではありません。霊長類では中脳ドーパミンニューロンの活動が時間差分型の報酬予測誤差と対応するという古典的証拠があります。一方ミツバチでは、嫌悪学習にドーパミン系、糖報酬を伴う食餌性学習にオクトパミン系が重要であることが薬理学的に示されています。ここから導かれるのは、比較神経科学の基本原則です。機能の相同性と、実装の相同性は同じではありません。
生態的課題が「何を情報とするか」を決める
生物にとって重要なのは外界を物理的に忠実に再構成することではなく、生存と繁殖に必要な変数を十分な精度で抽出することです。ゼブラフィッシュの紫外系は全視野で均一な高性能色覚を作るのではなく、獲物探索に使う網膜部位で特殊化していました。マウスでは、進化的に反復して現れる危険に対して、経験依存性を抑えた比較的固定的な回路に価値を組み込む利点が考えられます。ゼブラフィンチでは、高次聴覚領域が自分の歌や学習した歌に単純音とは異なる応答を示し、音響波形が周波数の集合ではなく社会的カテゴリーとして処理されます。
ミツバチ、魚、鳥、哺乳類は系統的に大きく隔たっており、色を使った採餌のような似た課題も、共通祖先から保存された単一の設計で解かれているわけではありません。異なる実装で同種の生態課題を解いた結果が、現在の多様性だと解釈できます。
計算モデルで意味の種差を整理する
効率的符号化:何を保存すべき情報とみなすか
ハエの視覚系を用いた古典的研究は、自然環境の光強度統計に合わせた応答変換が、限られた応答範囲を効率的に使えることを示しました。神経系は世界をそのまま写すのではなく、遭遇する刺激分布に応じて符号を最適化しうるのです。さらに生物にとって有用なのは情報量の最大化そのものより、捕食者・獲物・配偶相手を判定する変数を優先的に保存することでしょう。「何を取り違えると困るか」という歪みの重みが種ごとに異なれば、同じ刺激から残される情報も変わります。
ベイズ推定:尤度も事前分布も種ごとに違う
知覚を外界原因の推定とみなすと、受容器が違えば尤度が異なり、生息環境と発達経験が違えば事前分布が異なります。結果として事後分布、すなわち推定された「世界の状態」も一致しません。ヒトの感覚運動課題では、刺激の統計分布と感覚不確実性を組み合わせた行動がベイズ的推定と整合することが示されており、嗅覚回路の局所可塑性で臭気と報酬の統計を学習するベイズ型モデルも提案されています。
強化学習と予測符号化:報酬関数と予測対象の違い
同じ状態表現でも報酬関数が違えば、意味は変わります。刺激の意味とは物体ラベルではなく、「この刺激のもとでこの行動をとると将来何が起こるか」という種・個体固有の期待価値だと捉えられます。予測符号化の枠組みでは、上位回路が入力を予測し、上がってくるのは主に予測誤差だとモデル化されますが、学習に使う入力分布が種ごとに違えば、「次に予測すべきもの」も違ってきます。地上性小型哺乳類では捕食者手掛かり、採餌昆虫では花色と匂い、捕食性魚類幼生では小型獲物の紫外コントラスト、鳴禽では社会的な歌系列が優先されうるということです。
要するに、意味の種差は、同一刺激を異なる「センサー+世界モデル+価値関数+学習史」に通した結果の差として要約できます。
実験で何が分かり、何が分からないか
手法ごとの守備範囲
行動実験は、刺激が実際に接近・回避・捕食・社会反応を変えるかを測ります。ただし同じ行動が異なる内部表現から生じうるため、行動だけで神経符号は同定できません。電気生理は受容体やニューロンのチューニングを高い時間精度で測れ、カルシウムイメージングは集団表現の変化を捉えるのに適します。光遺伝学や遺伝学的除去は相関から因果へ進む手段で、「その入力を人工的に作ると行動が出るか」「除くと意味づけだけが失われるか」を検証できます。近年はゼブラフィッシュで、全脳イメージングと三次元光刺激を統合した実験系も実現しています。
比較実験で避けるべき落とし穴
最大の誤りは、装置側で刺激を揃えただけで「同じ刺激を与えた」とみなすことです。同じモニターRGB値は、紫外感受性動物にとって同じ受容器刺激ではありません。厳密な比較には、種ごとの受容体分光感度や機械伝達特性を測り、受容器レベルの入力を計算する必要があります。第二に、純音や単色光は回路同定に便利でも、意味は空間配置・時間系列・自己運動・社会的履歴に依存するため、自然刺激統計を失わない設計が求められます。第三に、系統的非独立性です。ヒトとマウスの共通点を普遍原理とみなすと、哺乳類共通祖先由来の一つの特徴を二重に数える可能性があります。
主観的経験の比較は、説明より測定がボトルネック
カラスでは、閾値近傍の刺激に対して「知覚したと報告したかどうか」と対応する終脳ニューロン活動が見つかっています。層状新皮質をもたない鳥類でも、単純な感覚入力を超える知覚関連活動が成立しうるという強い比較証拠です。しかしこれは、その経験がヒトと同質だという証明ではありません。神経活動が報告準備や注意、記憶と相関する可能性を完全には排除できないためです。ヒト自身についても、主要な意識理論を直接比較した大規模な検証がどちらか一方を決定的に支持する結果には至っておらず、単一指標で異種間の意識を判定するのは現状では過剰です。
結果として推論の確度には階層があります。検出・弁別・価値づけ・文脈依存的解釈までは実験的に評価しやすく、「知覚したという内部状態がある」は議論の余地があり、「ヒトと同じ質感で感じられる」は現在の方法では直接比較できません。
まとめ
同じ刺激から異なる意味が生まれるのは、刺激そのものが意味を運んでいないからです。一次感覚段階では「何が入力として存在するか」が種ごとに異なり、中枢では「それは何の原因か」という推定が異なり、価値系では「それにどう行動すべきか」が異なります。さらにこの三層は発達と学習によって個体内でも変化し、長期的には各生物が生きてきた生態環境と自然選択に制約されています。マウスの生得的嫌悪と学習性嫌悪の解離、ゼブラフィッシュの紫外捕食特化、ミツバチにおける異なる受容器と強化系、鳴禽の学習依存的な歌表現は、互いに独立な系統からこの多層的説明を支持しています。
一方で、その違いが各生物にどう感じられているかという問いだけは、同じ確度で答えられません。今後の中心課題は、外界刺激の一致と受容器入力の一致を実験的に分離し、自然な行動ループの中で大規模神経記録と因果操作を組み合わせ、受容・表現・価値・経験の各階層を別々に測る比較神経科学を確立することです。
コメント