進化を「遺伝子頻度の変化」として捉える集団遺伝学は、突然変異・浮動・選択を明確な確率過程として扱えるため、現代進化生物学の土台になってきました。一方で、発生、可塑性、行動、環境改変、DNA以外の伝達経路が進化の方向そのものを形づくるとする「有機体中心」の視点が、近年あらためて注目されています。
本記事では、両者の関係を整理します。そのうえで、発生的偏り・非遺伝的継承・間接遺伝効果・ニッチ構築を数理モデルに組み込む方法と、それを実験で検証する道筋を解説します。
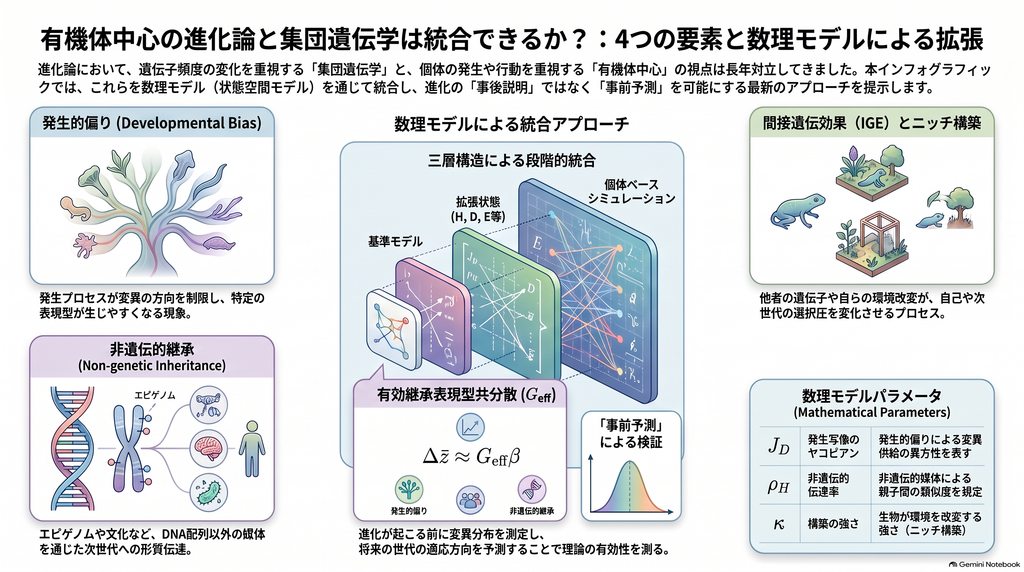
有機体中心の進化論とは何か:集団遺伝学との対立点
拡張進化総合説(EES)と批判的立場
「有機体中心」は標準化された学説名ではありません。ここでは「発生・可塑性・行動・環境改変・非DNA伝達が、変異の生成、伝達、選択環境そのものを構造化する」という立場を指すことにします。
拡張進化総合説(EES)は、発生的偏りや包括的継承、ニッチ構築に進化的な因果性を積極的に認めます。これに対し Futuyma(2017)らの批判的立場は、現代の進化理論はこれらをすでに取り込めるため、基本理論を改める必要はないと主張します。この論争は、概念的にはまだ決着していません。
拡張表現型と「有機体中心」は同じではない
注意したいのは、個体の外に及ぶ表現型効果を指す「拡張表現型」が、もともと遺伝子中心的な説明から生まれた概念だという点です。「遺伝子が環境に作用する」ことだけなら、従来のモデルでも記述できます。進化動態が質的に変わりうるのは、その環境変化が次世代の発生や適応度に作用し、再び遺伝子頻度へ戻ってくるフィードバックまで明示したときです。
統合の鍵となる4つの要素
発生的偏り(developmental bias)
Uller ら(2018)は発生的偏りを、「遺伝的・環境的な摂動が、表現型空間のあらゆる方向に均等ではなく、特定の方向の変異を生じやすくする現象」と整理しています。これは自然選択の代わりになる概念ではありません。発生的偏りそのものも選択によって進化しうるため、「選択か制約か」という二分法は適切ではないとされます。
数理的には、発生写像 D の局所ヤコビアン JD を使うと、新しく生じる表現型変異の共分散を次のように表せます。ΣZnew≈JDΣunewJD⊤
この行列の固有値の偏りが変異供給の異方性を表します。さらに、主要な変異方向と選択勾配がどれだけ揃っているか(整列度 ϕ)も、実証研究で使える指標になる可能性があります。
非遺伝的継承(non-genetic inheritance)
Day & Bonduriansky は、DNA配列による伝達成分 g と、それ以外の媒体による伝達成分 h を同じ形式で扱う理論を示しました。対象にはDNAメチル化、small RNA、親由来の資源、文化などが含まれます。ここでの「非遺伝的」は「遺伝子が関与しない」という意味ではなく、「伝達媒体がDNA配列そのものではない」という区分です。
実証面では、Arabidopsis の epiRIL(Johannes et al., 2009)が重要です。DNA配列差を抑えた系統で、メチル化状態の違いが開花時期などの形質差と結びつき、複数世代にわたって安定に伝わることが示されました。ただし、動物では生殖系列での再プログラミングなどがあるため、同じ一般性を仮定するのは難しいとされています。
モデル化では、次のように分解することが重要になります。Ht+1=ρHHparent+αEEt+αGGt+1+ε
親子の類似性が、真の伝達(ρH)によるのか、環境による再誘導(αE)によるのか、遺伝的制御(αG)によるのかによって、進化上の意味はまったく変わるためです。
間接遺伝効果(IGE)と拡張表現型
Moore, Brodie & Wolf(1997)は、他個体の遺伝的形質が焦点個体の表現型に与える影響を、間接遺伝効果として量的遺伝学に組み込みました。線形近似では、表現型は (I−ΨA)−1D という「フィードバック増幅器」を通して決まります。このため、社会的相互作用が進化応答を増幅したり抑制したりする可能性があります。これは「個体外への効果は集団遺伝学に統合できない」という主張への有力な反例です。
ニッチ構築と環境継承
ニッチ構築は、生物が環境を改変し、その結果として選択圧を変える過程です。二遺伝子座モデルでは、進化的慣性や安定多型の生成・消失が起こりうることが示されています。
統合モデルでは、構築の強さ κ と、環境変化が次世代まで残る度合い δE を分けて考えます。累積的な効果はおおむね κ/(1−δE) に比例するため、環境の「記憶」が長いことが決定的に重要になると考えられます。
古典的集団遺伝学モデルをどう拡張するか
三層構造による段階的な統合
統合は次の三段階で進めるのが現実的です。
- 第一層(基準モデル): Wright–Fisher モデル、Lande 方程式、Price 方程式をそのまま使います。
- 第二層(拡張状態モデル): 遺伝状態 G に加えて、非遺伝的継承状態 H、発生写像 D、社会的相互作用 Ψ、環境 E を導入します。
- 第三層(個体ベースシミュレーション): 非線形性や空間構造が効いてくる場合に限って移行します。
最初からすべてを複雑なシミュレーションにしないことで、追加した要素ごとに予測上の価値を評価できます。
有効継承表現型共分散 Geff
提案モデルの中核は、次の近似です。Geff=JeffΣIJeff⊤,Δzˉ≈Geffβ
ΣI は遺伝状態と非遺伝状態の共分散をまとめた行列、Jeff=(I−ΨA)−1JD です。古典的量的遺伝学は、H=0、Ψ=0、JD=I とした特殊ケースにあたります。つまり、従来理論を捨てずに「どの追加項が必要か」をデータで選べる形になっています。
ただし、環境が個体群によって変化し続ける長期的なニッチ構築は、この静的な近似では表しきれません。表現型平均と環境状態の連立動力学として扱い、固定点や分岐、ヒステリシスを調べる必要があります。
実験でどう検証するか
「事後説明」ではなく「事前予測」で比べる
統合理論の価値は、「発生も環境も重要だ」という後づけの説明ではなく、古典モデルと異なる予測を事前に出せるかどうかで決まります。
たとえば発生的偏りについては、まず選択を始める前に摂動実験で変異分布を測ります。その後、独立した複数の集団を実験進化させ、進化の方向が予測どおりになるかを確かめます。この順序なら、進化した結果から偏りを見つけるという循環論法を避けられます。
モデル比較でも、G のみの M0 から G+H+D+Ψ+E の M4 までを入れ子にして当てはめます。そのうえで、将来の世代や未知の環境に対する予測精度で評価することが重要です。
有望な実験系
- 植物(Arabidopsis): 遺伝背景・エピ状態・土壌履歴・隣接個体を因子として組み合わせた多世代実験により、ρH、κ、δE、Ψ を同時に推定できる可能性があります。
- マイクロバイオーム: 2025年には、宿主の遺伝背景を固定したマウスに腸内細菌叢を連続移植し、宿主ゲノムの変化なしに行動形質が選択に応答した実験が報告されています。微生物叢は独自のゲノムをもつため、「非宿主ゲノム継承」と呼ぶほうが正確でしょう。
- 自然集団: 遺伝変異とエピ変異を位相付けしたハプロタイプ解析や相互移植実験によって、自律的なエピ変異と遺伝的制御を区別できる可能性があります。
未解決課題
最大の壁は因果識別です。親子の類似性だけでは、真の伝達、共通のDNA、共通の環境を区別できません。また、現在の G 行列の主方向と進化方向が一致していても、それだけで発生の因果とは言えません。G 行列自体が過去の選択の産物である可能性があるからです。
さらに、変数を増やせばどんな軌跡にも当てはまってしまうという過剰適合の問題があります。これを避けるには、独立した介入実験によるパラメータ推定と、保持データを使った予測検証が欠かせません。
まとめ
有機体中心の進化論と集団遺伝学のあいだに、原理的な矛盾はないと考えられます。統合の鍵は、遺伝子頻度だけを状態変数とするモデルから、遺伝状態・非遺伝的継承・発生写像・社会的相互作用・構築環境を同時に扱う状態空間モデルへ拡張することにあります。
発生的偏りは JD、非遺伝的継承は ρH、IGEは Ψ、ニッチ構築は κ と δE として、推定可能な量に置き換えられます。そうすれば、「EESは必要か」という論争を、「追加した変数が予測精度をどれだけ高めるか」という検証可能な問いに変えられます。
今後の焦点は、伝達忠実度と遺伝的制御の分離、選択前の測定に基づく前向きな進化予測、そして多世代にわたるゲノム・エピゲノム・表現型・環境の統合データセットの構築です。
コメント