切断されたプラナリアが頭と尾を正しく作り直し、アホロートルが失った肢を分節ごとに再構成する。この現象を説明するとき、研究者はしばしば「身体は目標形態(target morphology)を知っている」と語る。しかしこの言い方は、比喩なのか、それとも測定可能な物理状態を指しているのか。実はここには複数の主張が混在しており、区別しないまま議論すると過大評価にも過小評価にも転びやすい。本稿では、二つのモデル生物の実験と理論モデルを突き合わせ、「目標状態」の実在性がどの水準まで支持されるのかを整理する。
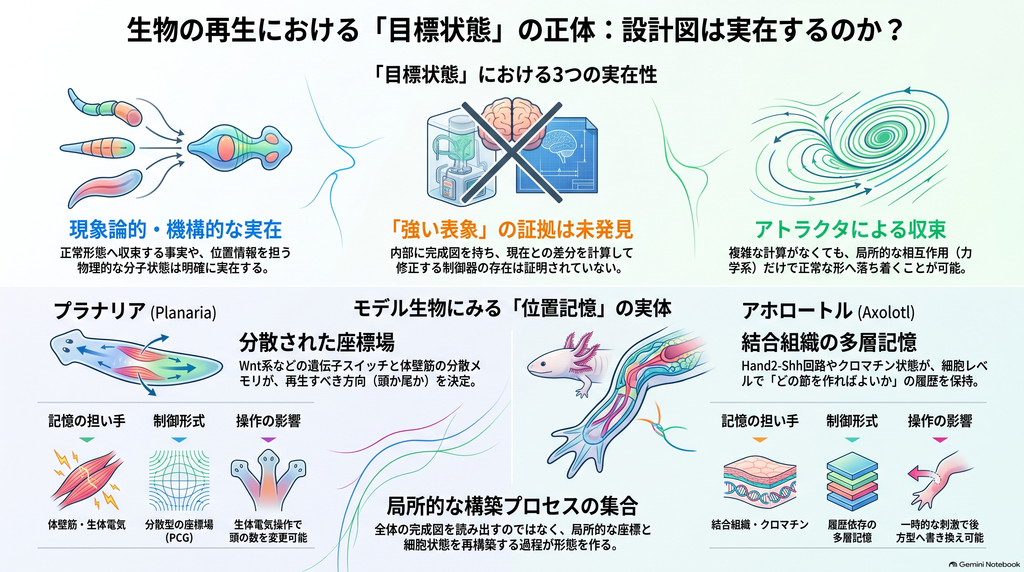
発生的「目標状態」には三つの異なる意味がある
力学系としての収束
第一の意味は、切断位置や断片サイズが変わっても最終的に限られた正常形態へ落ち着く、という現象論的な収束性である。これは観察事実として堅固だが、内部に何かが保存されていることまでは含意しない。
位置情報の物理的実装
第二の意味は、細胞や組織が「自分は前方か後方か」「近位か遠位か」という情報を実際に保持している、というものである。分子やエピジェネティック状態として測定でき、操作すれば結果が変わる以上、これは物理的な情報担体と呼んで差し支えない。
内部参照としての表象
第三の意味はもっと強い。完成した身体像を内部に持ち、現在形との差を計算して修正する制御器が存在する、という主張である。三者のうち、実証の負荷が圧倒的に重いのはこの水準だ。
プラナリアが示すのは「座標場」であって完成形ではない
極性を決めるのはWnt系の局所回路
プラナリアで最も確立しているのはWnt–β-catenin系による前後軸の選択である。β-cateninの活性を下げると後方の切断面から頭が生じ、逆方向の操作では前方が尾側化する。さらに前方創傷では分泌因子notumが誘導されてWntを抑え、頭側の状態を選び取る。これは「再生結果を決める内部状態が実在する」ことの明確な因果証拠だが、そこにあるのは頭部の幾何学的テンプレートではなく、どちら側を作るかを決めるスイッチである。
位置情報を担うのは体壁筋という分散メモリ
Wnt/BMP/FGF系の位置制御遺伝子(PCG)は体壁筋に集中して発現し、切断後には位置依存的に発現が再設定される。単一細胞解析でも、前後軸に沿った領域特異的な発現が筋細胞集団に見いだされている。つまりプラナリアの位置情報は、単一の司令中枢ではなく組織全体に分散して保持されていると考える方が実験に近い。
「再生できる場所」と「臓器がある場所」は分離できる
重要なのは、位置場を実験的に動かすと眼が再生される位置は移動する一方、そこから外れた既存の眼もしばらく維持され得る、という報告である。これは位置場が臓器の存在を逐一指定しているのではなく、新規再生を許可する座標領域を規定していることを示す。完成形テンプレート説に対する、無視できない制約といえる。
生体電気が示すのは「履歴依存の再生状態」
膜電位やギャップ結合の一過性の操作が、薬剤除去後の遺伝子発現や最終的な頭の数まで変え得るという結果は、ゲノム配列を変えずに将来の再生結果を規定する状態が存在することを強く示唆する。ただしここでも、「二頭という完成形が絵として保存された」と結論する必要はない。一頭型と二頭型に対応する別々の安定状態を持つ多安定な回路であれば、同じ現象は生じ得るからである。
アホロートルの「位置記憶」はより直接的な分子実体を持つ
記憶を担うのは筋ではなく結合組織
再生芽が履歴を失った均質な細胞塊になるという単純なモデルは支持されていない。系譜追跡は再生芽が組織起源を保持した前駆細胞の集合であることを示し、移植実験は近遠位のアウトカムを左右するのが筋ではなく結合組織であることを示した。位置記憶がどの細胞種に宿るかが、因果操作で絞り込まれている点が重要である。
Hand2–Shh回路は記憶の読み出しと書き換えを可視化した
後方の結合組織は発生期から残るHand2の発現を保持し、切断後にShhシグナル中心を立ち上げる。再生が終わるとShhは消えるがHand2は残る。さらに前方の再生芽を一時的にShhに曝露すると、この回路が起動して後方型の能力が持続し、次の切断時にも発現する。読み出し・書き換え・再読み出しを同一の分子系で追跡したこの結果は、位置記憶の実在を示す現時点で最も直接的な証拠の一つといえる。
記憶は多層で、しかも可塑的である
分節特異的なH3K27me3の分布、CYP26B1によるレチノイン酸レベルの設定、Hox/Meis系、Prrx1陽性結合組織集団──位置記憶は転写因子一つではなく、クロマチン・モルフォゲン制御・細胞集団状態をまたぐ多層システムとして実装されている可能性が高い。しかもそれは読み取り専用ではなく、再生芽という可塑的な時期に書き換えの窓が開く状態変数に近い。
「目標に向かうように見えること」は目標表象の証拠にならない
反応拡散とアトラクタで十分説明できる範囲
局所的な生成・分解・拡散だけで長距離の濃度勾配は作れ、閾値で運命を読めば正常なパターンが生じる。このモデルに「頭をこの形に完成させよ」という参照画像は一切含まれていない。同様に、正常形態に対応する状態集合(アトラクタ)へ多様な初期条件が引き込まれるだけでも、誤差を減らしているように見える挙動は生成できる。目標性が力学そのものに埋め込まれている場合、内部比較器も参照信号も不要である。
最適制御として記述できることと、生物が最適化していることは別
再生を「正常形態からの偏差と制御コストを最小化する問題」として定式化することは可能だ。だがそれは研究者側の記述形式であって、生物が内部でその目的関数を計算している証拠ではない。強い表象説を支持するには、誤差信号に相当する量を生体内で直接読み出し、それだけを操作して修正挙動が変わることを示す必要がある。
実在性は水準ごとに評価すべきである
整理すると、実在性は次の順に弱くなる。多様な初期状態から同じ形態クラスへ戻るという現象論的実在は強く支持される。収束先を規定する分子・電気・クロマチン状態という機構的実在も、両生物で操作実験によって支持される。過去の状態が後の再生まで持続する記憶としての実在は、とくにアホロートルで直接的である。一方、完成形を内部に表象し現在形との差を計算する強い表象的実在については、現時点で直接証拠がない。既知のデータは分散した位置場と多安定な力学系で説明可能だからである。
つまり論争は「目標状態はあるか、ないか」の二択ではない。どの水準の主張をしているのかを明示すれば、対立の多くは解消する。
まとめ:実在するが、設計図ではない
現在の証拠に最も忠実な定式化はこうなる。発生的な目標状態は単なる観察者の比喩ではなく、位置記憶・シグナル場・多安定状態・力学的制約の集合として実在する。プラナリアではWnt/notumと体壁筋のPCGが座標系を担い、生体電気が非遺伝的な履歴状態を提供する。アホロートルではHand2、クロマチン、レチノイン酸系が多層の位置記憶を構成する。しかし、局所位置を覚えていることは全体の完成形を覚えていることではない。近位から遠位へ順次特定が進む過程や、再生位置と恒常維持位置が分離し得る事実は、形態が固定テンプレートの読み出しではなく、損傷後に座標と細胞状態を再構築する過程であることを示している。
決着をつける鍵は哲学ではなく実験にある。現在形とは独立した参照状態を読み出せるか、欠損量そのものを符号化する誤差信号を同定できるか、そしてその信号だけを書き換えて再生の終点を予測的に変更できるか。ここが示されれば、目標状態は「アトラクタとして実在する」から「内部参照として実在する」へ格上げされる。逆に、局所的な位置場と多安定ダイナミクスだけで介入結果まで予測できるなら、「目標」は有用だが高次の記述にとどまる。
コメント