はじめに:なぜ「生物学的な正常」を問い直すのか
「心臓が正常に働いている」「この器官は機能不全だ」「胚はまだ未完成だ」。私たちはこうした表現を自然に使いますが、そこには単なる事実の記述を超えた評価が含まれています。この「成功と失敗を恣意的でなく区別できる」という性質が、生物学的規範性の核心です。
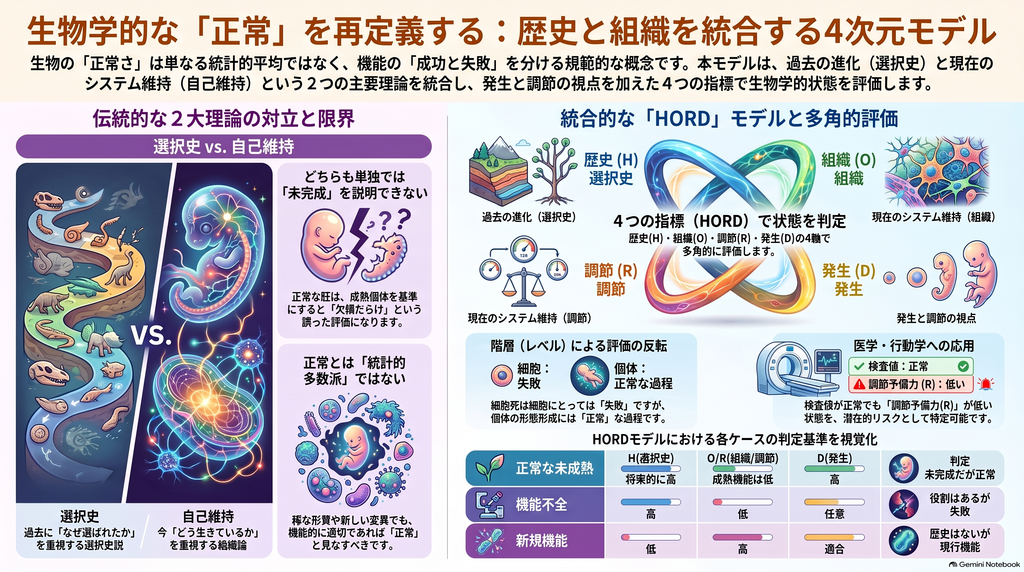
本記事では、規範性を説明する二大理論である選択史的機能論と自己維持・組織論を比較し、どちらも単独では「未完成」をうまく扱えないことを確認します。そのうえで、発生と階層を加えた四次元の統合モデルを紹介し、医学や発生学への応用可能性を考えます。
生物学的規範性とは何か
生物の機能が通常の物理現象と違うのは、失敗しうるという点にあります。惑星が軌道を外れても「軌道運動に失敗した」とは言いませんが、心臓が十分に血液を送れなければ「正常に機能していない」と評価します。
ここで言う規範性は倫理的な善悪ではありません。「この酵素の反応が遅い」という評価から「倫理的に悪い」という結論は出てきません。問題になっているのは、まず生物学内部での遂行の良し悪しです。
「正常」は統計的な多数派と同じではない
医学哲学では、健康を「参照集団で典型的な機能を発揮できること」と捉える統計的な考え方(Boorse の理論など)が知られています。しかし「多数派である」ことと「機能的に適切である」ことは論理的に別物です。まれな形質でも本来の機能を持ちうるし、新しい形質でも現在の生存に役立つ可能性があります。したがって正常性は、平均値ではなく規範への適合として理解する必要があります。
「失敗」と「未完成」は別物
機能不全を語るには、その形質が「何をするはずなのか」が先に定まっていなければなりません。一方、オタマジャクシが成体の肺や肢を持たないことは機能不全ではありません。成熟個体だけを基準にすると、正常な胚はすべて「欠損だらけ」になってしまいます。未完成とは、成熟機能はまだないが、段階に応じた発生能力が保たれている状態と捉えるべきです。
選択史的機能論:規範の「由来」を説明する
選択史的(selected-effect)機能論では、形質の機能を「祖先集団においてその効果が選択・維持に寄与した」という歴史に求めます。Millikan の proper function や Neander の selected-effect function が代表例です。
この立場の強みは、機能不全を明快に説明できる点です。壊れた心臓は血液を送れなくても「血液を送る機能」を失ったわけではなく、その機能に失敗していると言えます。
ただし、「適応主義」と同一視してはいけません。Gould と Lewontin が批判したように、現在役に立っているからといって、その効果が選択されたと安易に推定することはできません。発生的制約や副産物との区別には独立した証拠が必要です。
自己維持・組織論:規範の「現在」を説明する
自己維持・組織論は、規範を現在の生物体の因果的組織に置きます。Mossio・Saborido・Moreno は、機能を「自己維持的な組織の維持への寄与」と定義し、組織がその部分の存在条件を生み出す閉包関係を重視しました。
この系譜はオートポイエーシスに始まり、Di Paolo による適応性(adaptivity)の強調、Bich による調節的制御の重視、Barandiaran による可生存性空間への寄与という方向へと発展しています。新しい機能や可塑的な応答を直接扱いやすい一方、有益な因果的寄与をすべて機能とみなしてしまう「寛大すぎる」危険が指摘されています。
実験事例で見る二つの理論の違い
大腸菌の走化性:現在の調節
Berg と Brown による大腸菌の運動追跡は、環境に応じて行動を変える仕組みを示した古典的研究です。選択史説は「なぜこの機構が保持されたか」を、組織論は「この細胞が今正しく応答しているか」を問います。両者は競合せず、別の問いに答えているのです。
指間のプログラム細胞死:階層による反転
肢の形成では、指の間の細胞が計画的に除去されます。Pajni-Underwood らは、BMP と FGF のシグナル系がこの細胞死の制御に関わることを示しました。ここでは、細胞にとっての「死」が個体にとっての「正常な形態形成」になります。規範性にはどの階層で評価するかの指定が不可欠です。
洞窟魚の眼:退行と失敗の区別
洞窟型の Astyanax では、眼の形成が始まった後に退行します。Yamamoto と Jeffery の移植実験は、水晶体由来のシグナルの変化が関与することを示しました。表層型を基準にすれば「失敗」ですが、洞窟型では定着した通常の発生結果です。ただし、眼の退化そのものが選択された適応だと直ちに結論することはできません。
変異クローンと腫瘍:選択と健康のずれ
Colom らは、正常に見えるマウス食道上皮の変異クローンが初期腫瘍と競争し、排除しうることを示しました。この事例は、細胞レベルの競争的成功と個体レベルの正常性が別の評価軸であることを浮き彫りにします。
両理論が食い違うケース:新規機能・痕跡・発生
二つの理論の判定が分かれるのは、次のようなケースです。
- 新規機能:選択史はまだないが、現在の生存に役立つ形質。組織論は機能と認めやすく、選択史説は認めにくい可能性があります。
- 痕跡・旧機能:過去には選択されたが、現在はほとんど寄与しない形質。判定は逆になります。
- 発生:現在の自己維持だけでは、なぜ今の組織を解体して次の段階へ進むのかを説明しにくいという問題が、近年の議論(Rama、Cuciniello など)で指摘されています。
これらの食い違いは欠陥というより、二つの理論が異なる変数を測っていることの表れと解釈できます。
統合モデル:歴史・組織・調節・発生の四次元で考える
そこで提案されるのが、規範性を一つの「正常度」に還元せず、次の四成分を別々に評価する枠組みです。
- H(選択史):過去に何が選択・維持されたか
- O(現在組織):今の可生存性にどう寄与しているか
- R(調節):攪乱に応じて状態を修正できるか
- D(発生):段階に応じた次の状態へ移行できるか
これに**階層(L)・環境(E)・時間幅(τ)**を指定して評価します。
| ケース | H | O/R | D | 判定 |
|---|---|---|---|---|
| 成熟した正常機能 | 高 | 高 | 適合 | 正常 |
| 機能不全 | 高 | 低 | 任意 | 役割は明確だが遂行失敗 |
| 正常な未成熟 | 将来機能で高くてもよい | 成熟機能は低い | 高 | 未完成だが正常 |
| 新規機能 | 低 | 高 | 適合 | 現行機能だが歴史は未形成 |
| 痕跡 | 高 | 低 | 適合しうる | 歴史的機能のみ |
| 階層間衝突 | 階層依存 | 階層で反転 | 任意 | 細胞に有利だが個体に有害など |
この枠組みの利点は、どちらの理論が正しいかを決めるのではなく、判定の食い違いそのものを情報として保存できる点にあります。また、系統データ、介入実験、摂動からの回復試験、発生追跡という異なる方法で各成分を検証できる可能性があります。
医学・発生学・行動学への含意
医学では、「集団平均からの逸脱」「現在の自己維持の損傷」「調節予備力の低下」を分けて考えられます。検査値が正常範囲でも予備力が失われている状態を、潜在的な機能不全として分析できる可能性があります。ただし、生物学的な機能不全と治療の正当化は別問題であり、患者の苦痛や選好といった価値判断が加わります。
発生学では、成人中心の見方を避け、正常な未成熟と発生停止を区別しやすくなります。
行動学では、単なる運動と、自らの存続条件に応じた適応的な調節を区別できます。これは意識や意図とは別の、最小限の生物学的エージェンシーとして理解できます。
まとめ
生物学的な「正常・失敗・未完成」を、選択史か自己維持のどちらか一方に還元して説明するのは難しいと考えられます。選択史は新規機能や現在の調節を捉えにくく、自己維持は歴史的な機能不全の基準や発生の方向性を説明しにくいからです。
一方、歴史・現在組織・調節・発生を別次元として保持し、階層・環境・時間幅を指定して評価するなら、両理論は互いに欠けた情報を補い合う形で統合できる可能性があります。組織論自体も調節や発生へと拡張中であり、この四次元化はその研究動向とも整合的です。今後は、可生存性の境界をどう定義するか、どこまでを「個体」とみなすかといった論点の具体化が求められます。
コメント